


夏の果物売り場では、モモとネクタリンがよく並べて売られています。一方は白っぽい柔らかなうぶ毛に覆われており、もう一方はリンゴのようにつるつると滑らかです。ネクタリンはモモとスモモの交雑種だと思われがちですが、実はこの2つは同じ種に属しており、見た目の大きな違いは皮のうぶ毛の有無だけです。[3]では、モモのうぶ毛はいつ、どこで生え始めるのでしょうか。意外にも、その答えは果実ではなく「花の中」にあります。花が咲くおよそ4週間前には、つぼみの中に隠れた子房の表面にうぶ毛が現れ始めるのです。[4]
この記事では、葉より先に開くモモの花のつくりを見ていき、続いて中心にある毛に覆われた子房がどのようにしてうぶ毛のある果実へと育つのか、そして最後に、ネクタリンでは何がそのうぶ毛を消したのかをたどっていきます。
名前から誤解されてきた木
モモの学名は Prunus persica といい、バラ科サクラ属(Prunus)に分類されます。種小名の persica は「ペルシアの」という意味ですが、モモの原産地はペルシアではありません。ペルシア(現在のイラン)でモモが広く栽培され、そこからヨーロッパへ伝わったため、1700年代から1800年代のヨーロッパの植物学者たちは「この果実はペルシアから来た」というローマ時代の記録をそのまま信じ続けていました。[3]本当の原産地は中国だと考えられています。[1]『Flora of China』には、モモは中国北部原産であると記されており、真の意味での野生のモモはもはや存在しないとも付け加えられています。[2]
モモは栽培の歴史も非常に古い果物です。2014年に発表された研究以降、栽培化は早ければ紀元前6000年ごろに中国の浙江省で始まったと考えられており、杭州近くの跨湖橋(Kuahuqiao)遺跡から出土したモモの核が最古の考古学的証拠とされています。[3]
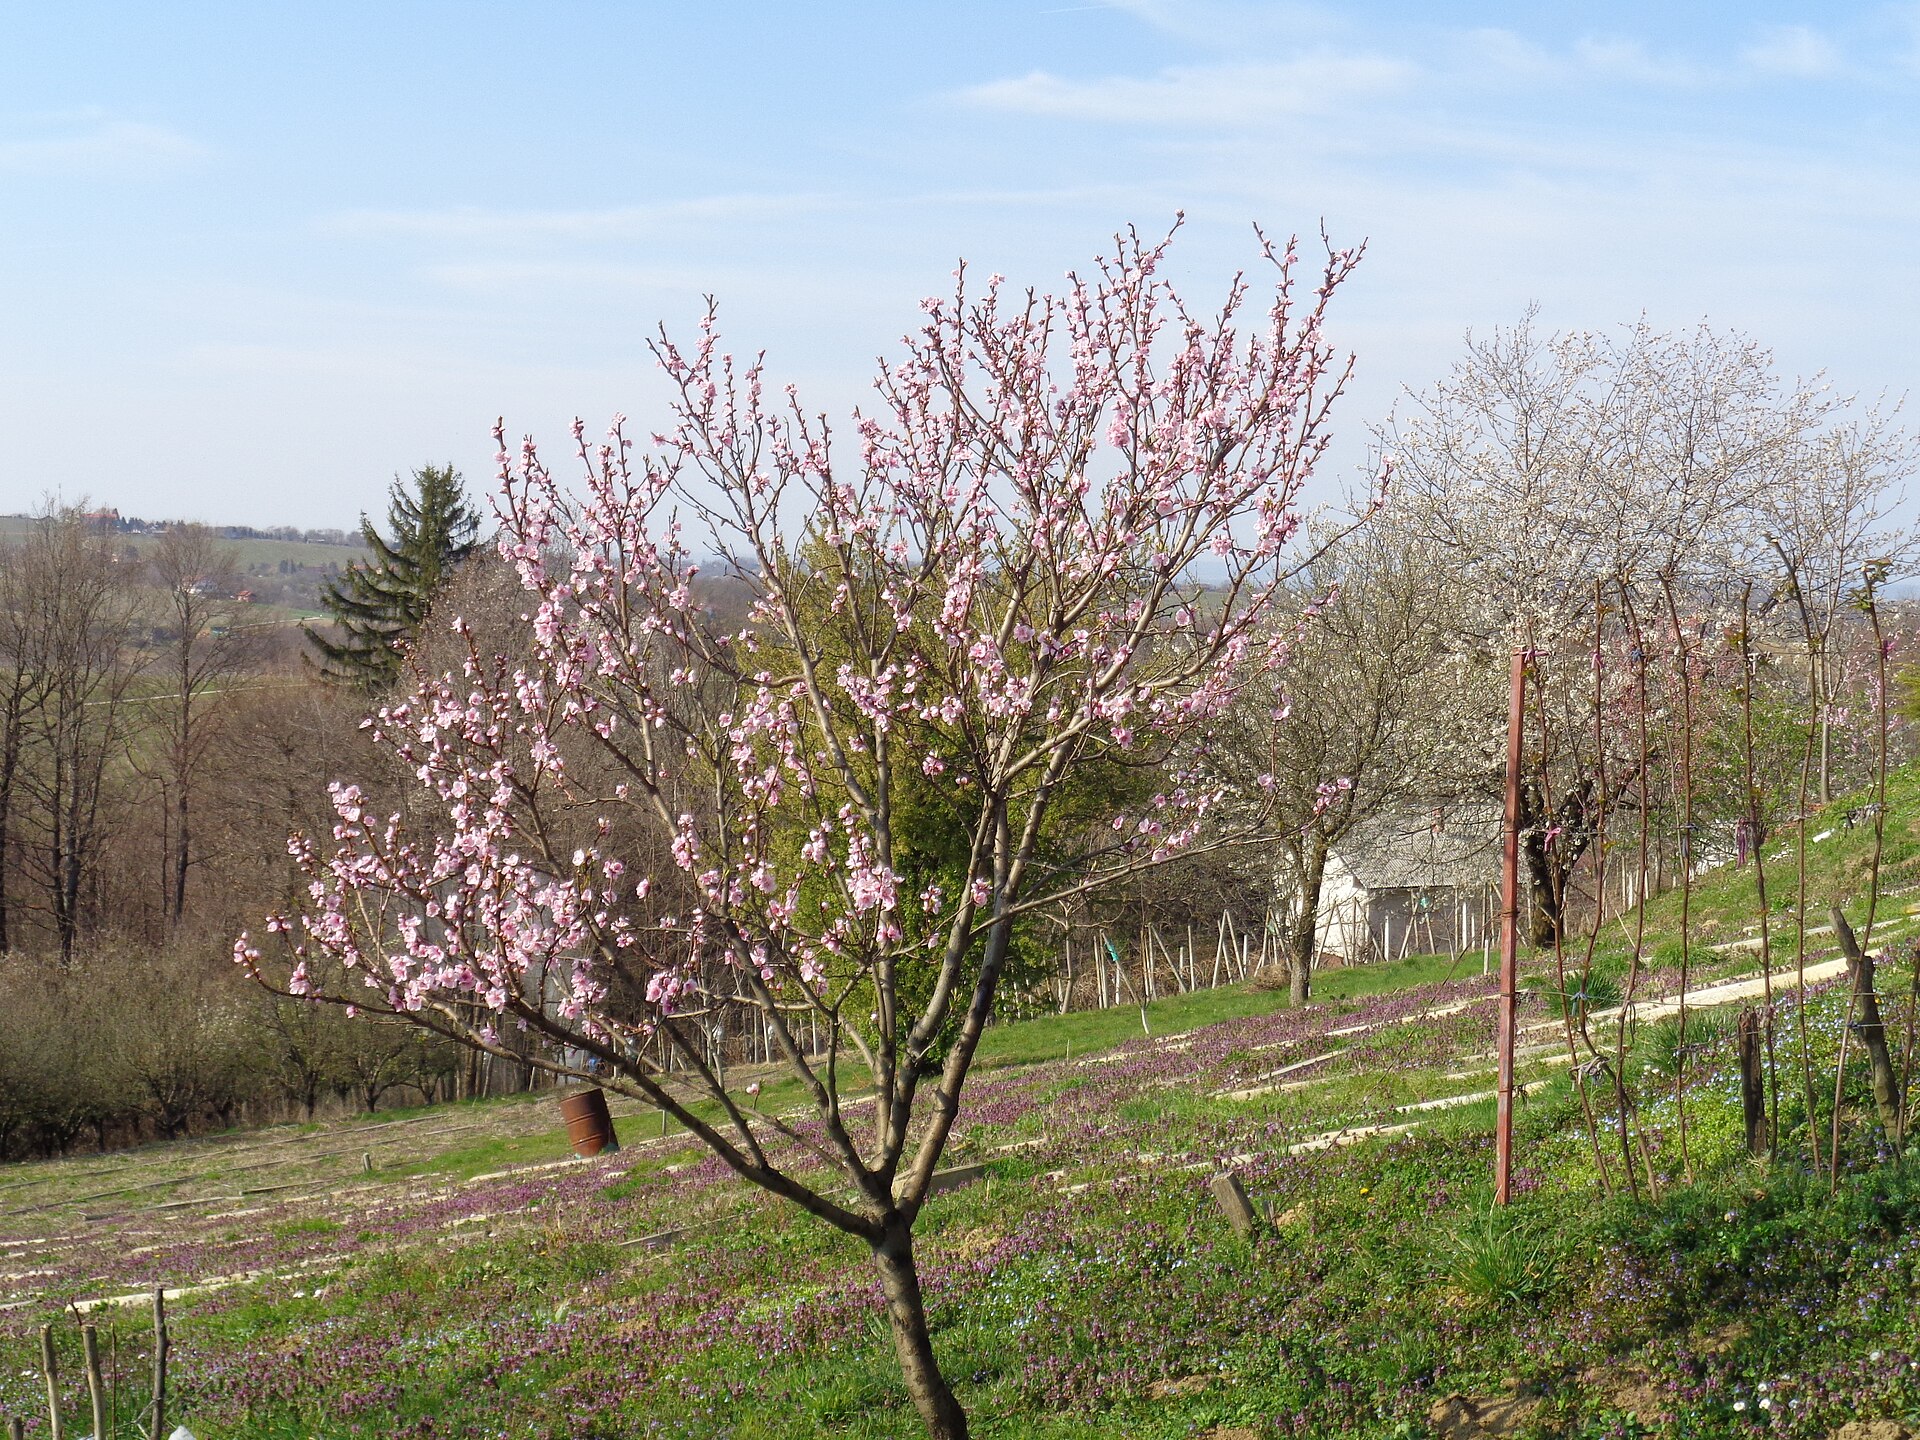
木そのものは落葉性の小高木です。高さが6.5メートルに達することはめったになく、果樹園では通常3〜4メートルほどに剪定されます。葉には光沢があり細長い槍のような形(披針形)をしていて、たいてい葉の付け根にアリなどの昆虫を引き寄せる液体を分泌する腺があります。[1]
葉より先に咲く花:5という秩序
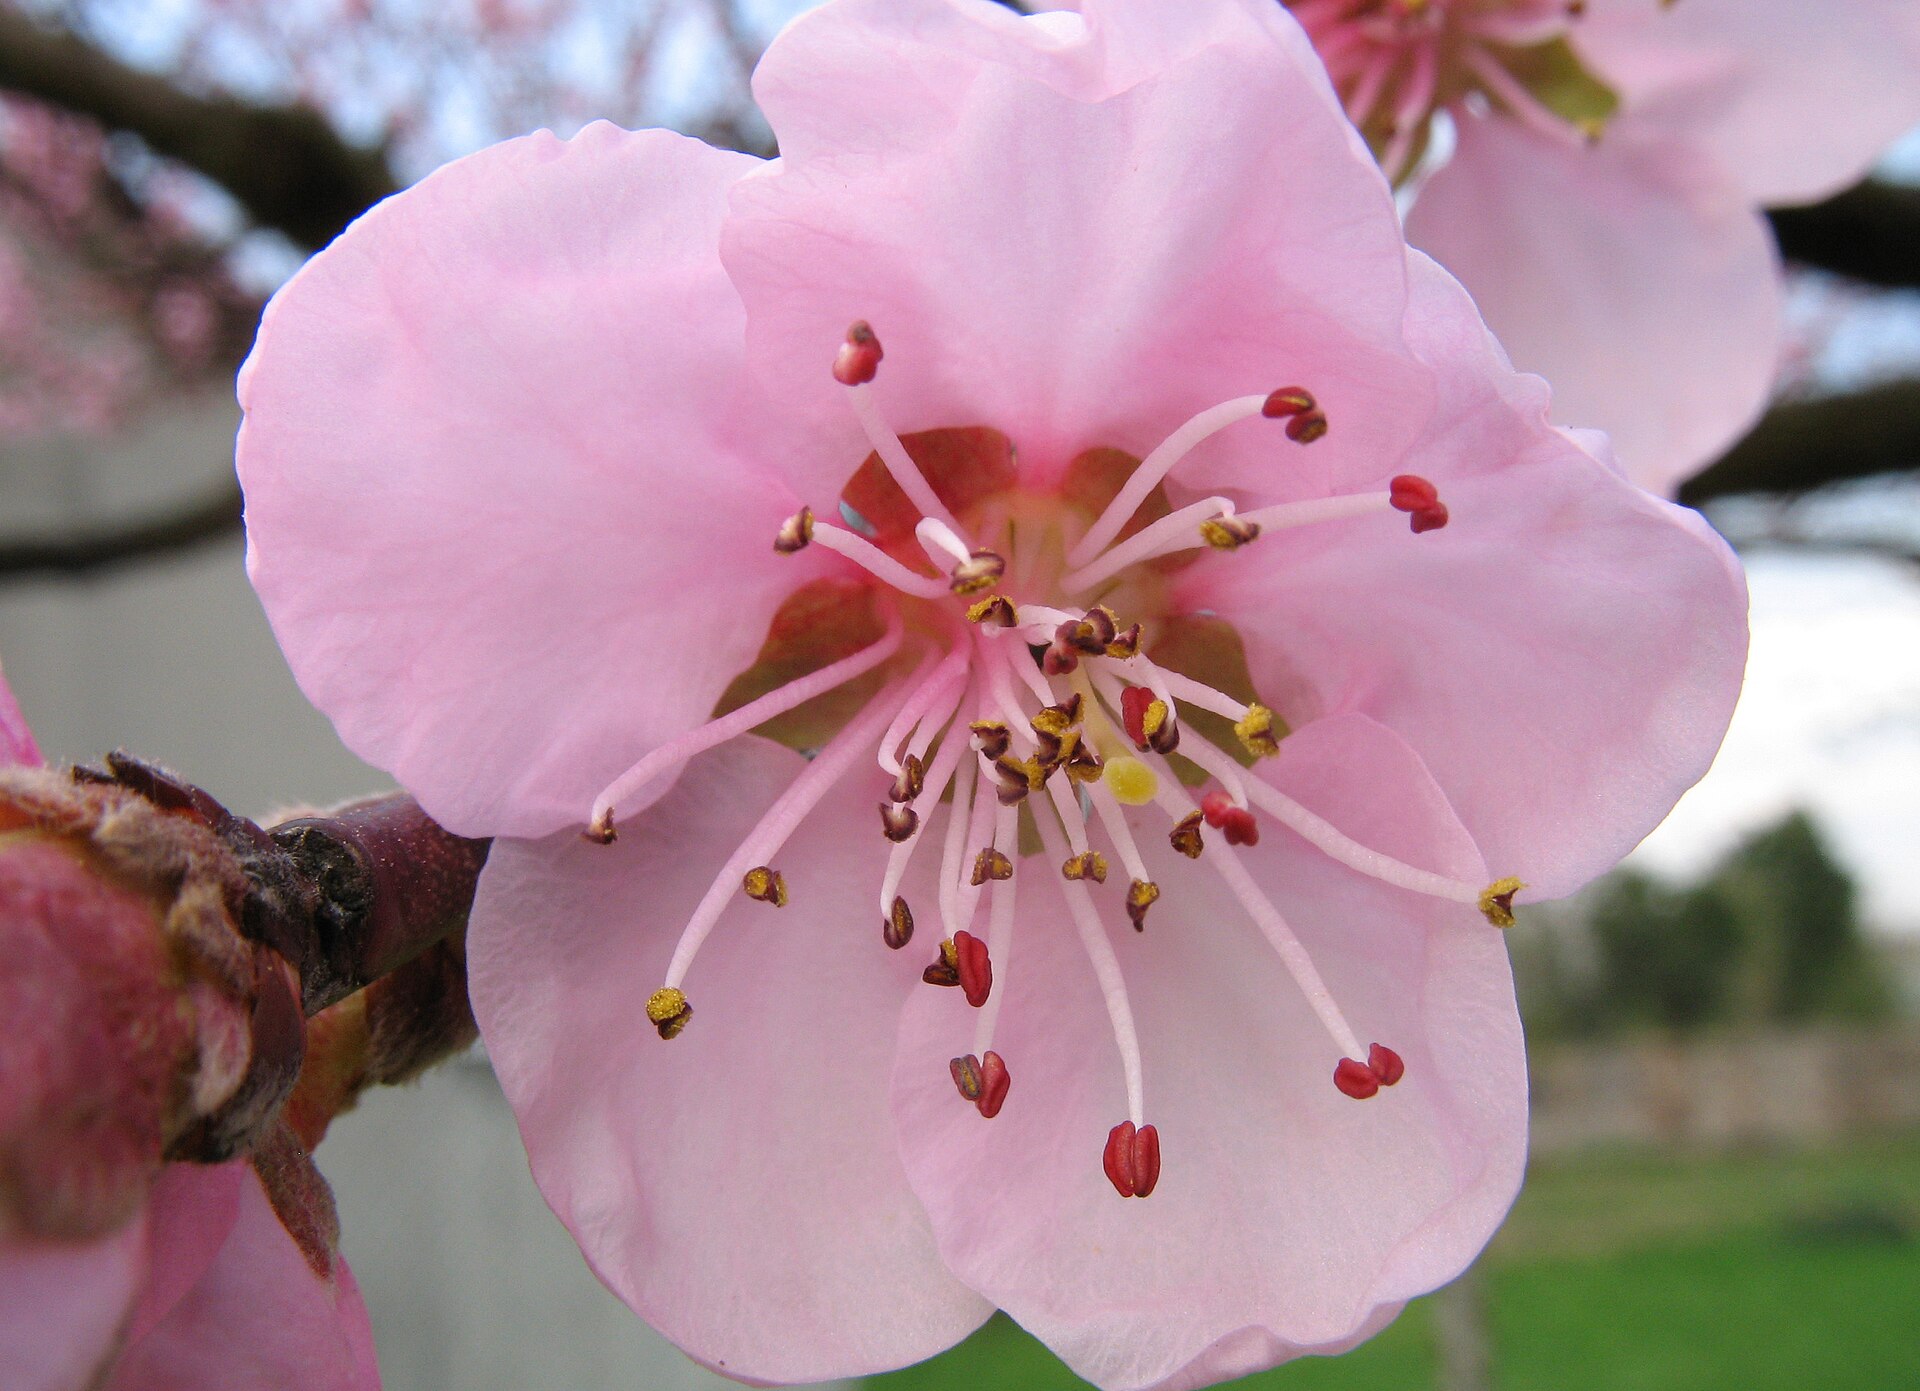
モモの花は通常、葉が出る前に咲きます。花はふつう1つずつ咲き、直径は2〜3.5センチメートルです。[2]果実を収穫するために育てられる品種はピンクや赤の花を咲かせるのが一般的ですが、観賞用として育てられる木の中には八重咲きのものもあります。[3]モモの花をサクラやスモモ、アンズの花と見分ける方法については、よく似た春の花を見分ける別記事で詳しく紹介しています。
1つの花をじっくり観察すると、整然としたつくりが見えてきます。花筒(かとう)と呼ばれる短い筒状の縁に、5枚の花びら、5枚のがく片、そして3重の輪になって並ぶおしべがついています。[1]おしべは20〜30本あり、赤紫色の葯がついています。花筒の中央には1本のめしべが立っており、その根元にある子房の中には、やがて種になる2つの胚珠が入っています。[2]
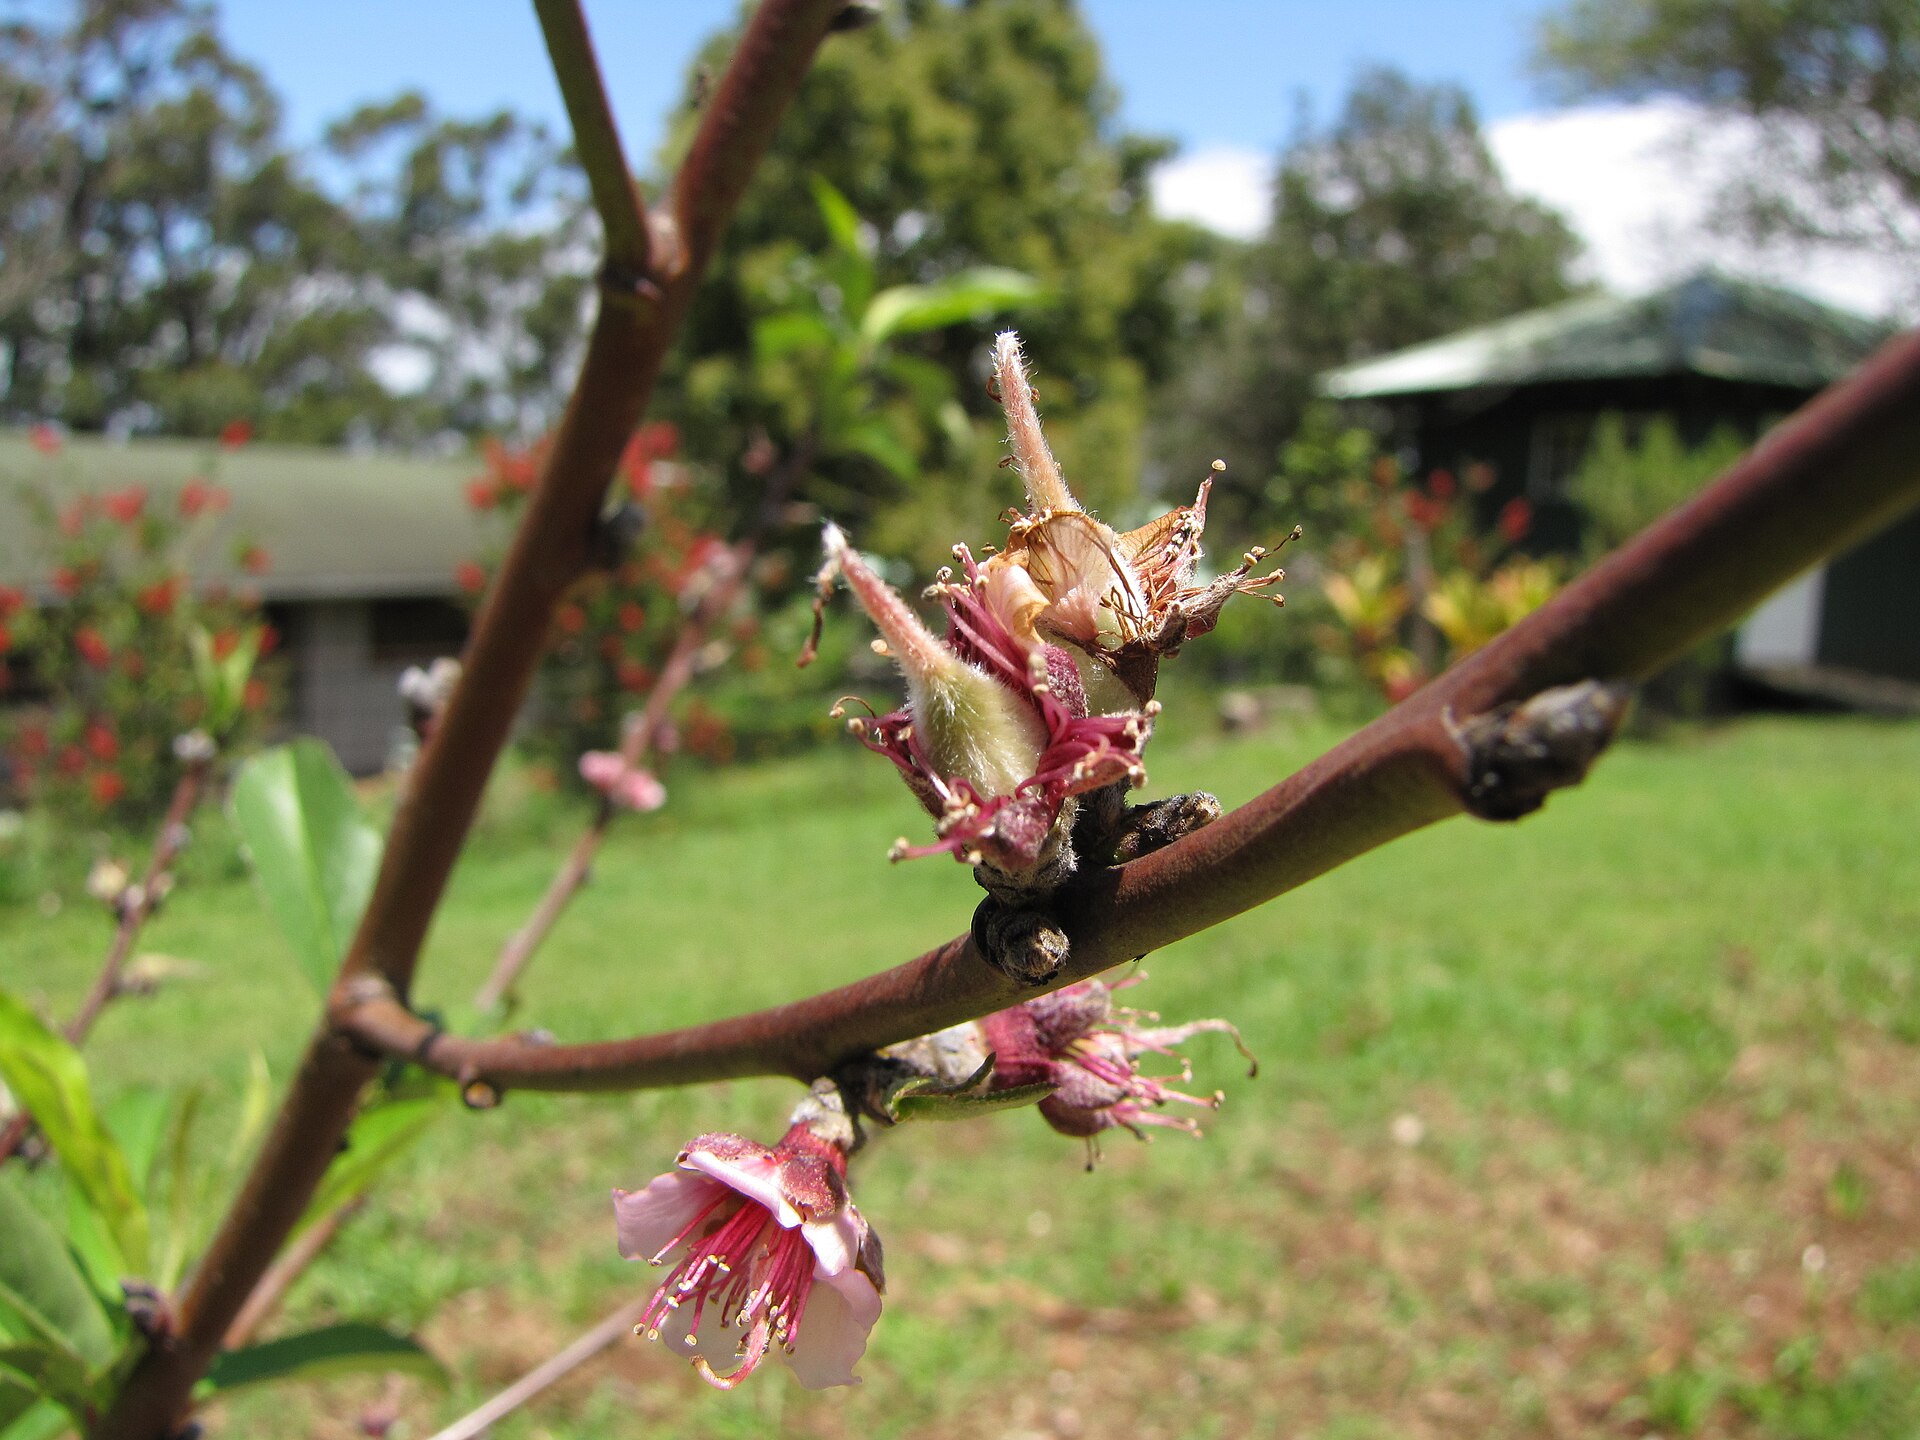
モモの花は自分自身の花粉で受精することができ、ほかの木からの受粉は全体のわずか5パーセントほどにすぎません。[3]受精が終わると花びらは落ち、子房が膨らんで果実になります。こうしてできるのは核果(かくか)と呼ばれるタイプの果実で、硬い核が種を包み、その周りを果肉が覆っています。[1]
うぶ毛はまず花の中の子房に生える
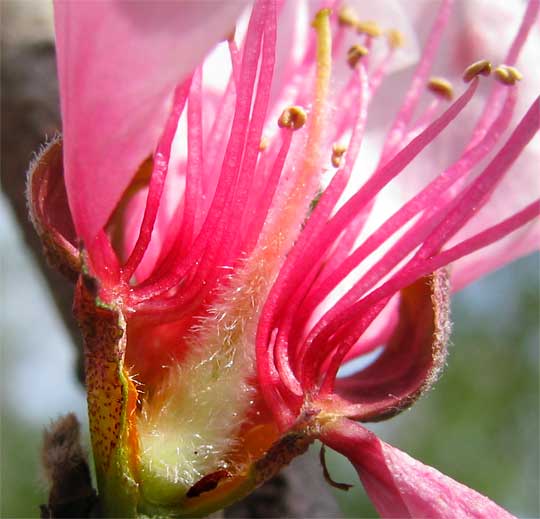
モモの花を縦半分に切ってみると、驚きの光景が現れます。花筒の底にある淡い緑色の子房が、細かな白い毛に覆われているのです。『Flora of China』にも、モモの子房には毛があると記されています。[2]この子房が受精後に果実へと育つため、子房に生えている毛こそがモモの皮のうぶ毛の始まりなのです。
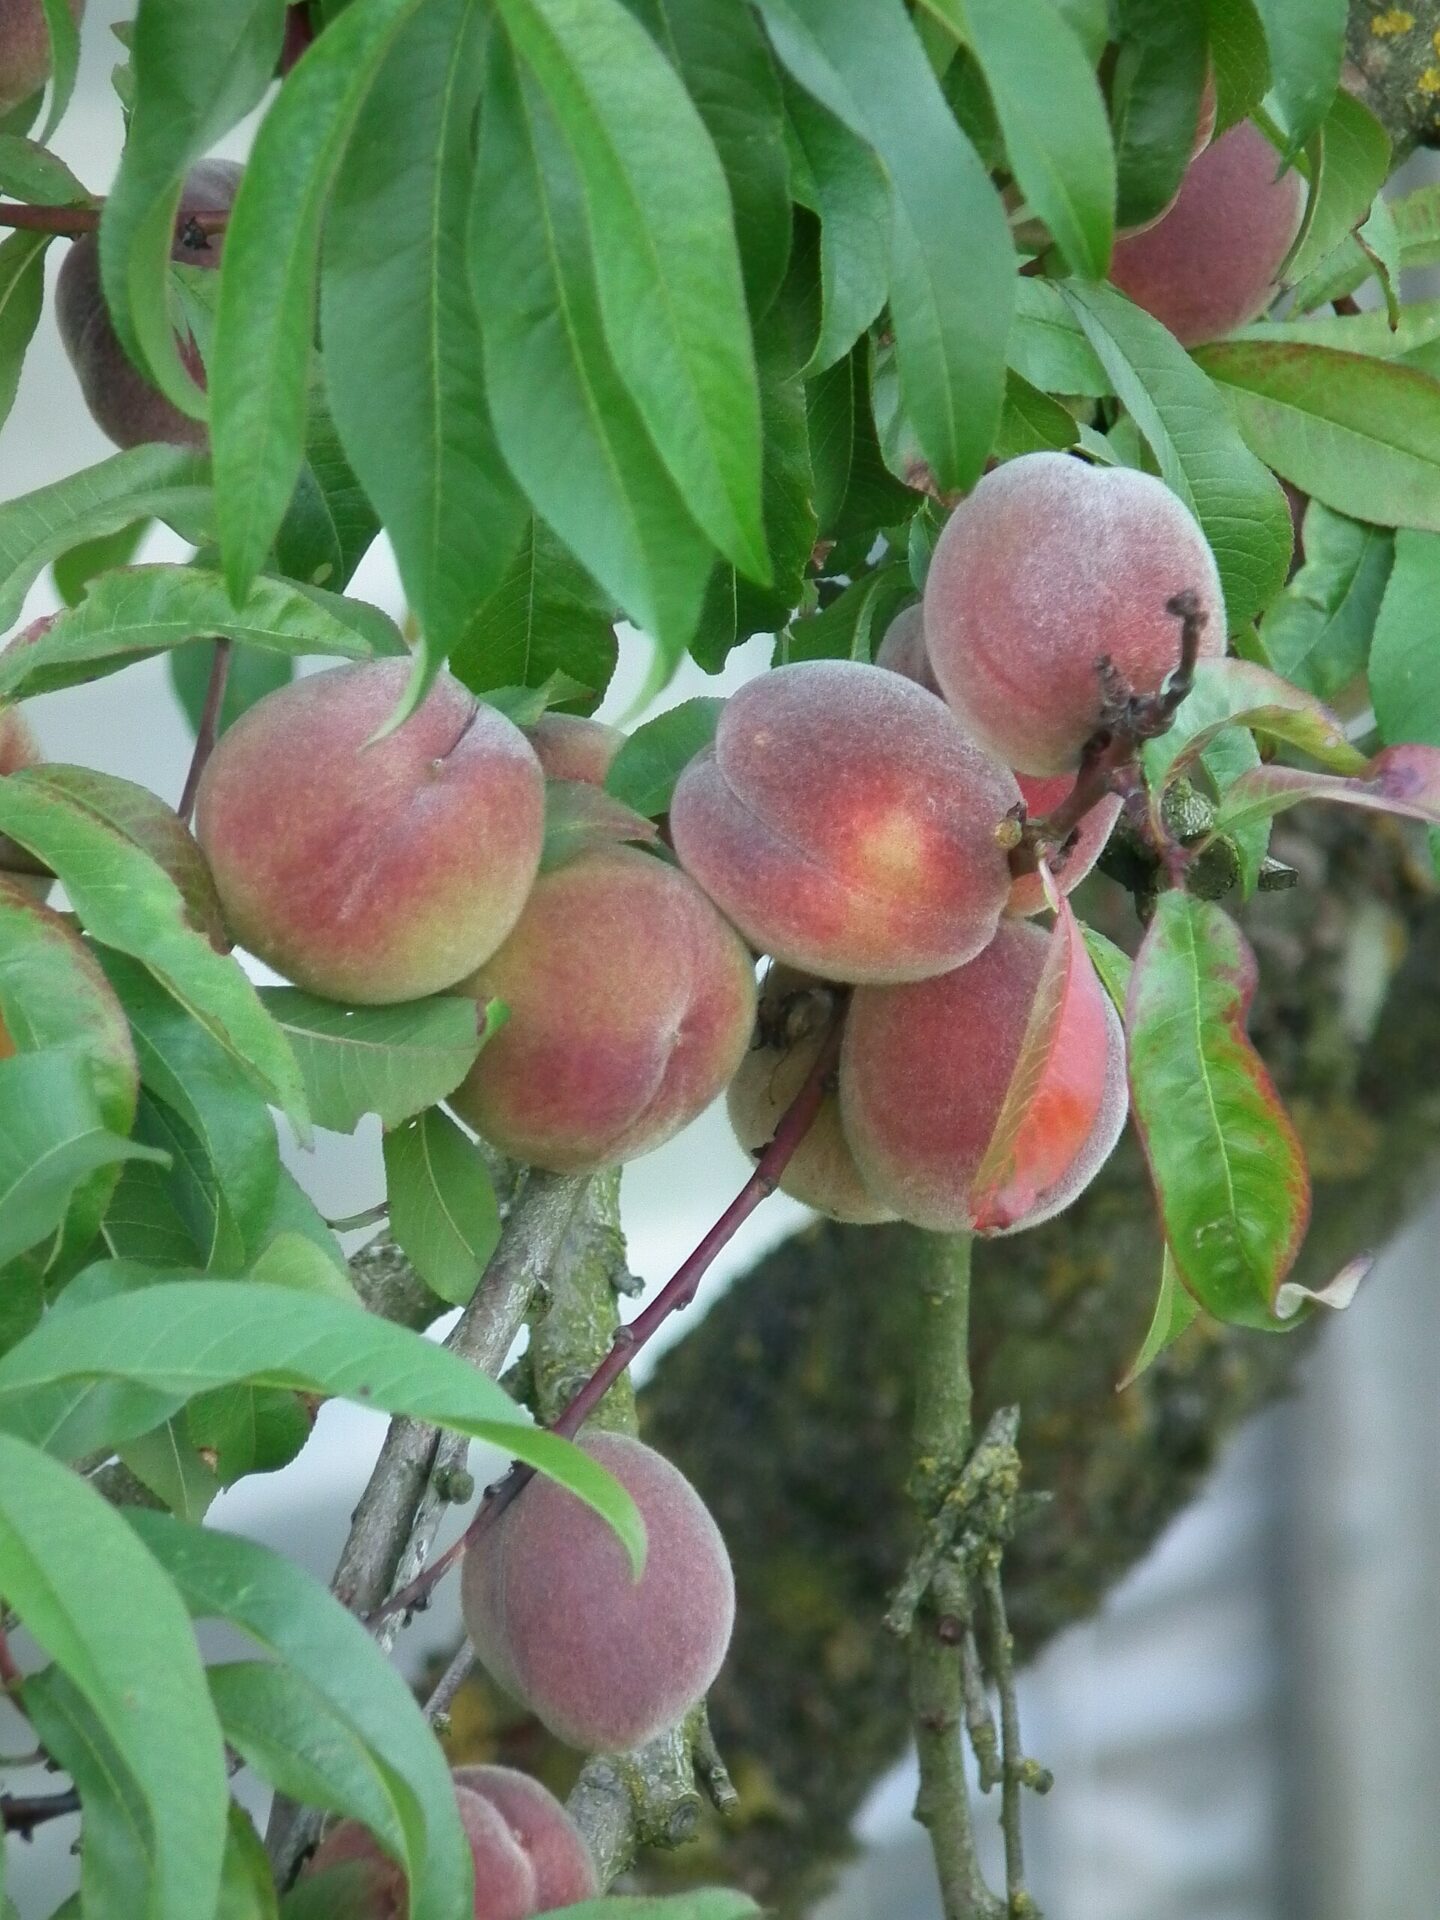
このうぶ毛は、私たちが思うよりもずっと早い段階で現れます。うぶ毛のあるモモの品種「Contender」を観察したところ、開花のおよそ4週間前にはすでに果皮の毛が子房に存在していることがわかりました。その毛をつくる遺伝子 PpeMYB25 は、それより少し早い開花5週間前に花芽の中で働き始め、開花1週間前まで活発な状態を保っていました。[4]つまり、花びらが開く前から、果実の外側の衣はすでにつぼみの中でつくられているのです。
この毛は果実の成長とともに伸びていきますが、果実が熟すころには、皮の表面にある毛のほとんどが死んだ細胞になっています。[4]それぞれの毛は薄いクチクラ層に包まれており、内部は多糖類の物質で満たされています。[5]
産毛の正体:トライコーム
植物学では、モモの産毛は表皮から小さく突き出た「トライコーム(毛状突起)」と呼ばれる構造でできています。モモの果実のトライコームは分泌物を出さない非腺毛であり、1つひとつが内部の空間が狭く細胞壁の厚い単一の細胞から成り立っています。その構造は、実験植物であるシロイヌナズナ(Arabidopsis)の葉の毛や綿の繊維に似ています。[6]
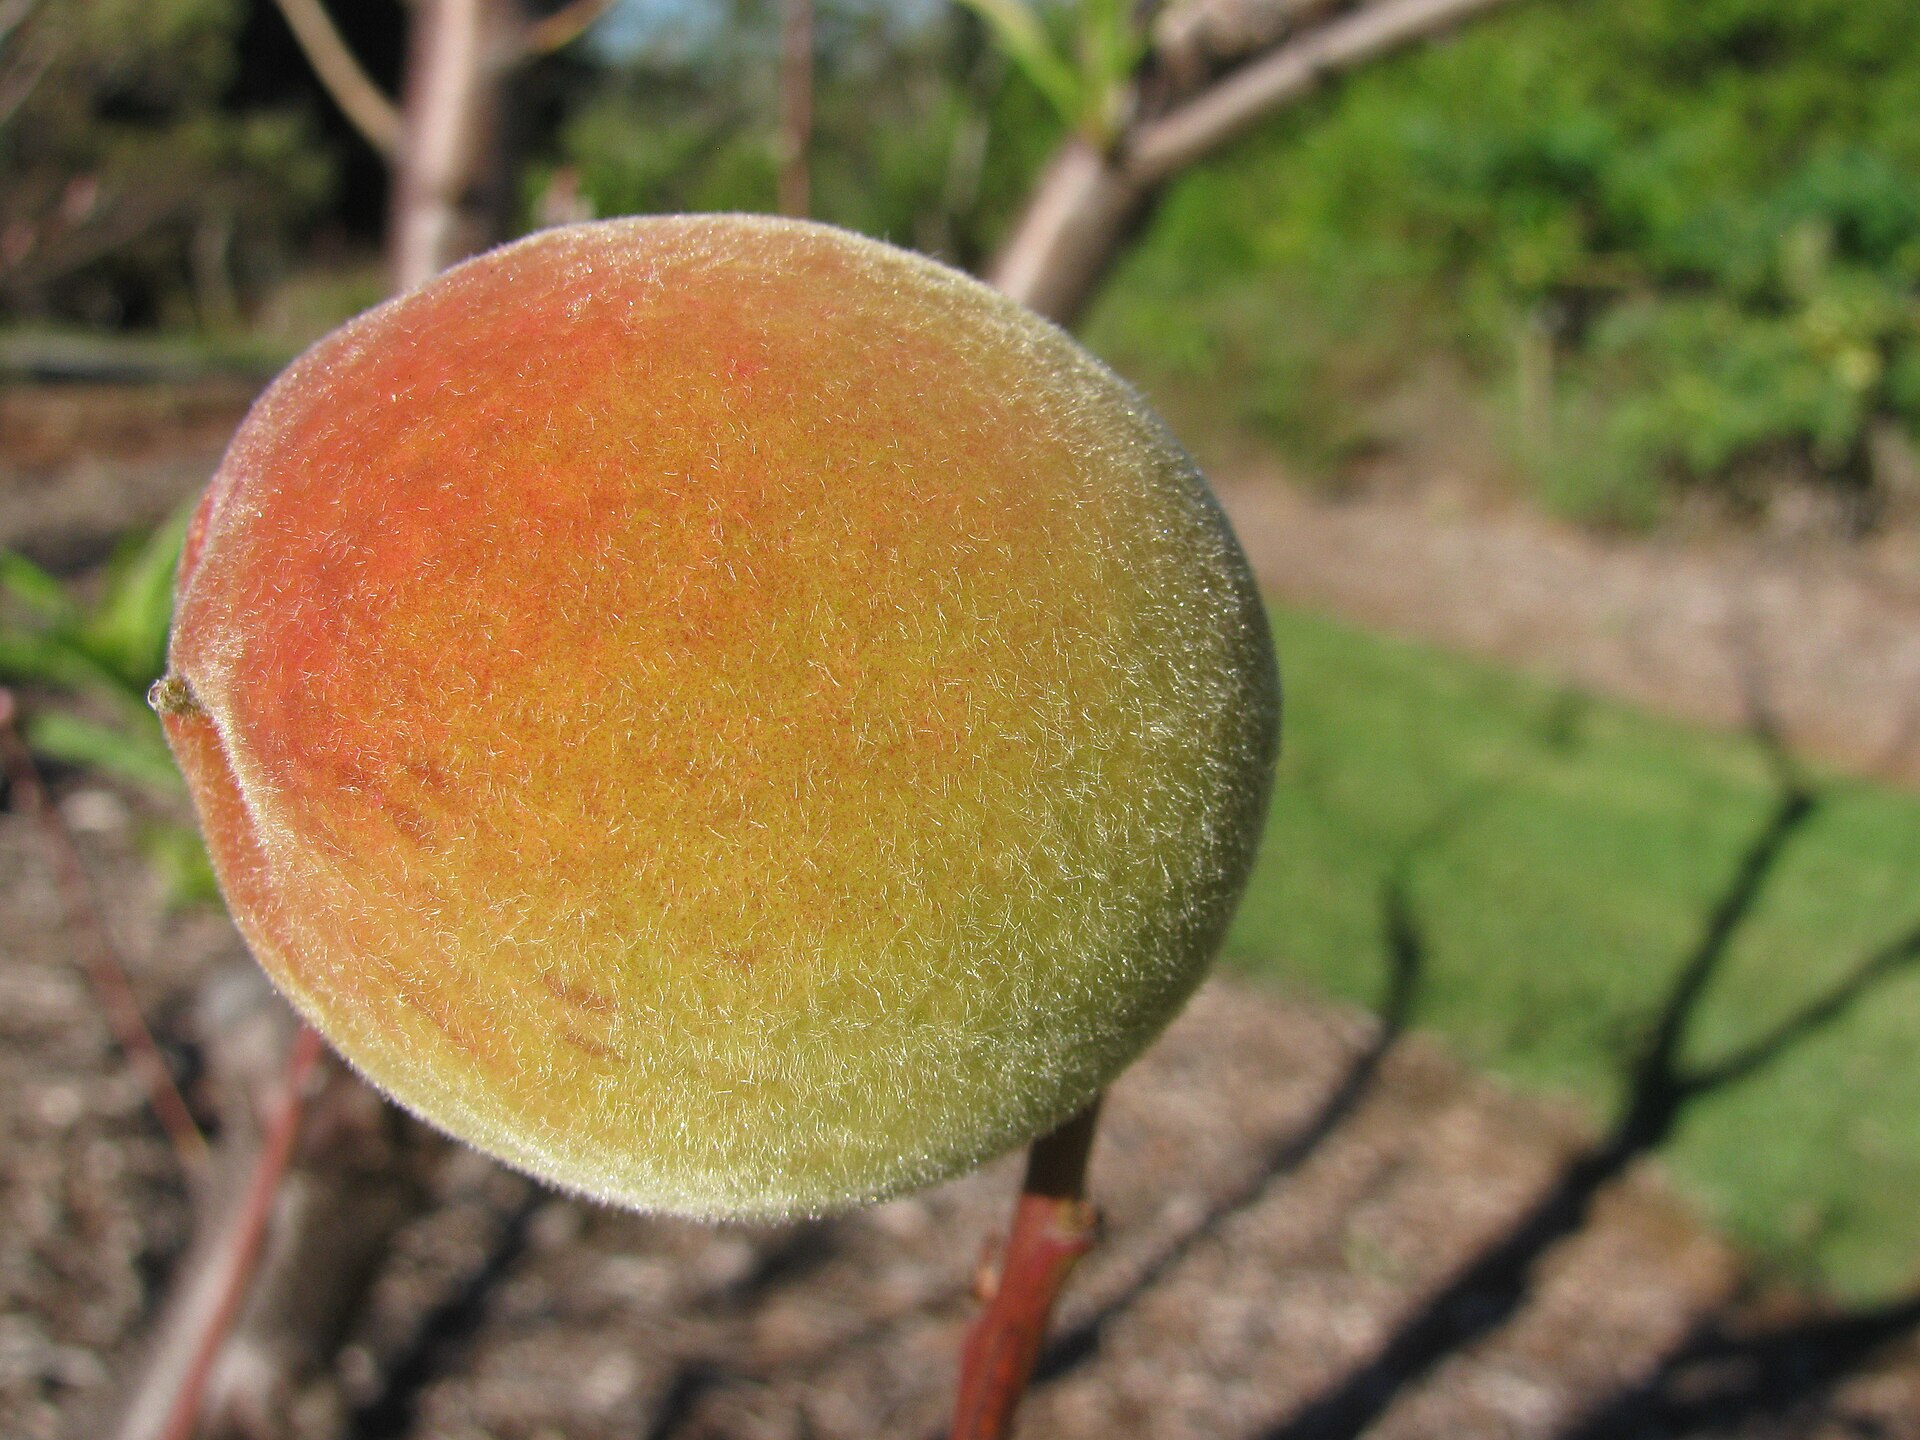
では、この毛にはどのような役割があるのでしょうか。果実のトライコームに関する総説では、モモのトライコームは病気からの防御、水分損失の調節、紫外線からの保護など、複数の役割を担う物理的なバリアとして説明されています。[6] 実験による裏付けもあります。スペインの研究者らがモモの皮を分析したところ、毛を剃り落とした果実や表面のワックスを取り除いた果実は、水分をより速く失うことがわかりました。また、毛の層とその下にあるクチクラでは水との相互作用が異なっており、皮の表面は性質の異なる2つの層でできていることも明らかになりました。[5]
しかし、店頭に並ぶモモは、収穫直後にブラシで産毛の多くが落とされていることが少なくありません。かつて果実を守っていた毛を取り除く理由として、研究者たちはアレルギーとカビの2つを挙げています。[6] ある研究では、モモのトライコームを取り除くことで、Monilinia属のカビによって引き起こされる収穫後の灰星病が明らかに減少し、果実表面の細菌の多様性も低下しました。[7] 木になっている間は果実を守っていた同じ毛が、収穫後には微生物がとどまりやすい場所になってしまうのかもしれません。
ネクタリンの意外な正体:たった1つの遺伝子の違い
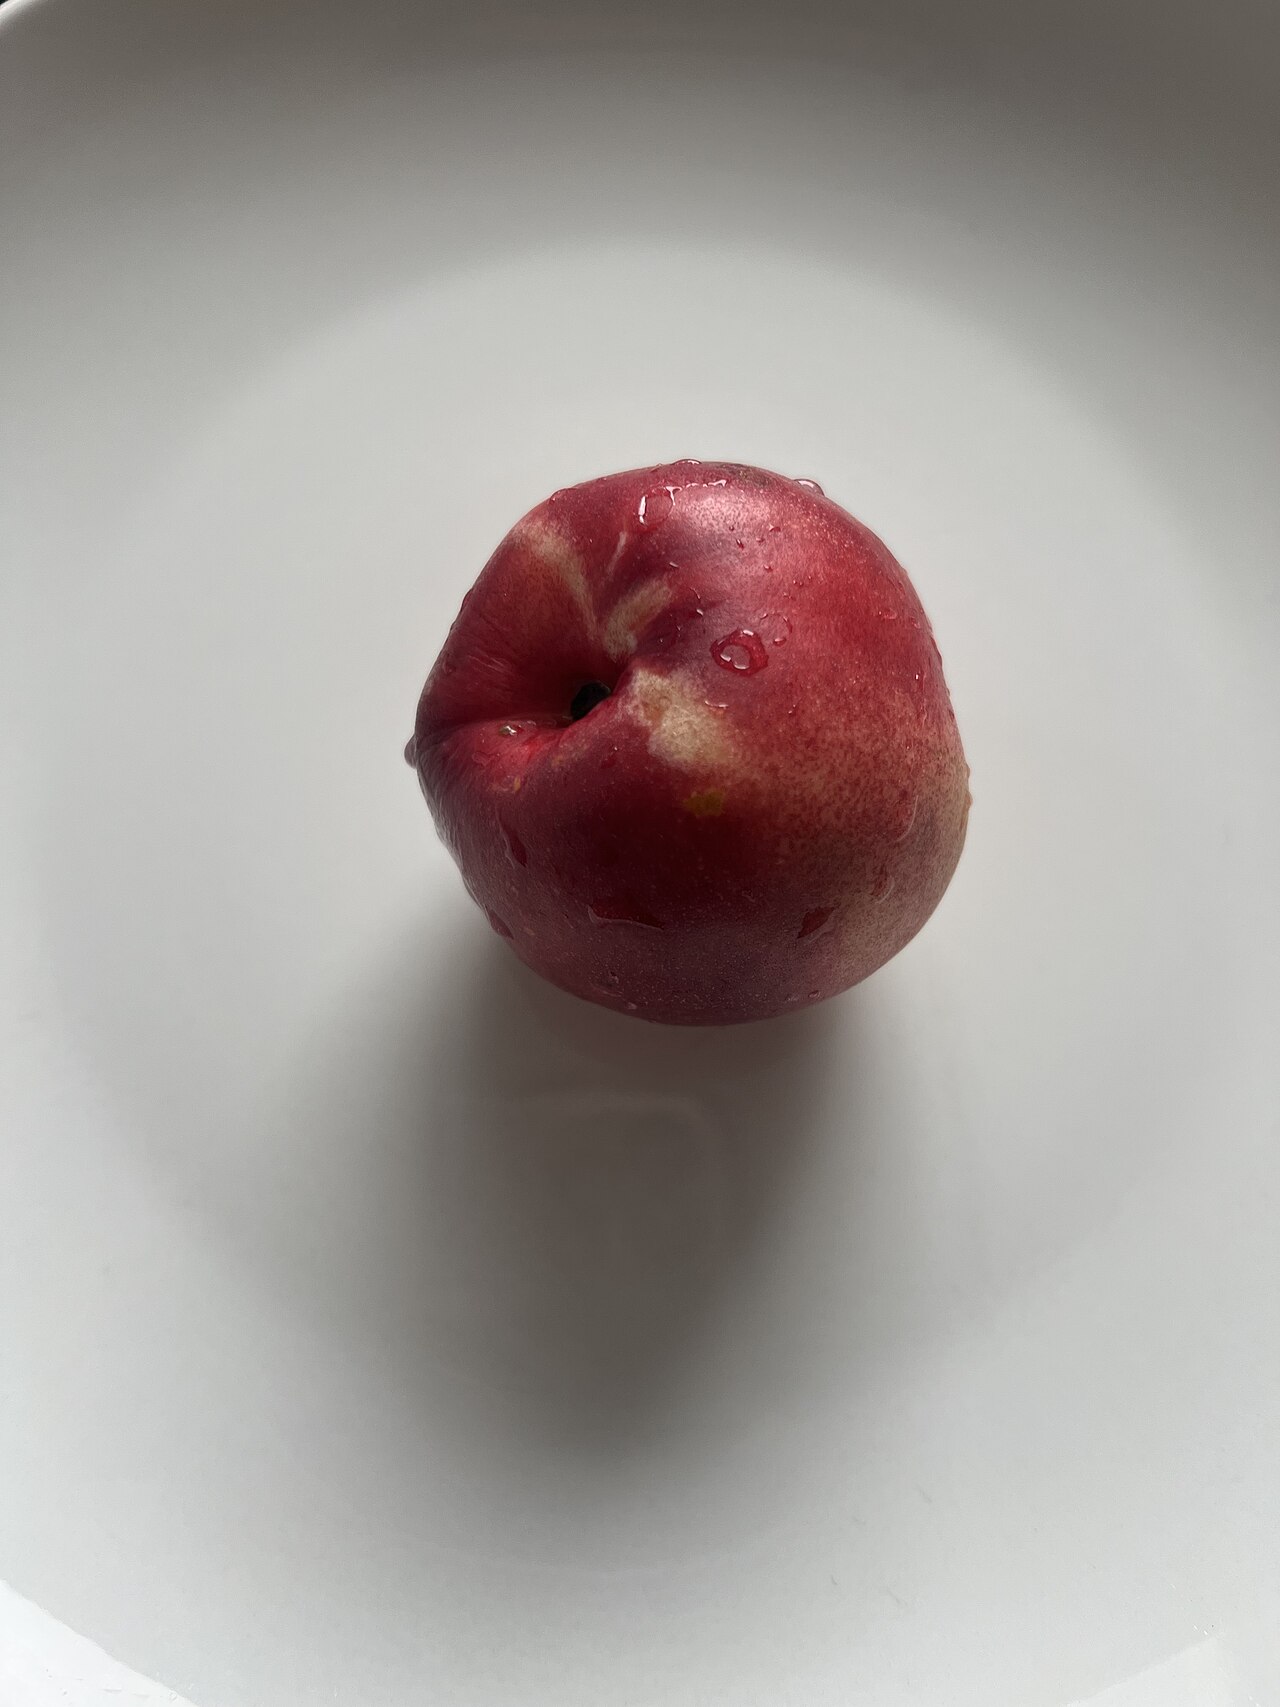
ネクタリンはモモとスモモの交配種ではありません。モモと同じ種(Prunus persica)に属しており、両者は別の果物として売られていますが、その違いは皮に毛、すなわちトライコームがないことだけです。すでに1906年の育種実験で無毛は潜性(劣性)形質であることが示されており、1917年にはアメリカの植物学者Ulysses Prentiss Hedrickが、両者の違いは別種や別変種ではなく単純な突然変異によるものだと主張しました。[3]
その突然変異の正体が突き止められたのは2014年のことでした。イタリアの研究者らは、毛のあるモモ「Contender」とつるつるしたネクタリン「Ambra」の交配から得られた第2世代の木305本を解析しました。そして、果実に毛が生えるかどうかを決めるG遺伝子座を、第5染色体上の約1.1センチモルガン、ゲノムにしておよそ635,000塩基対の範囲にまで絞り込みました。そこで見つかった候補が、植物における毛の形成を制御するR2R3-MYB転写因子の遺伝子PpeMYB25でした。[4]
ネクタリンでは、Ty1-copia型の「動く遺伝子」(LTRレトロトランスポゾン)がこの遺伝子の第3エクソンに割り込んでいます。その結果、アミノ酸が1つ変化した直後に終止シグナルが入り、タンパク質が112アミノ酸の長さで途切れてしまいます。実際、「Contender」の花芽では開花の5週間前からこの遺伝子のスイッチが入っていましたが、「Ambra」の花芽では発現がいっさい見られませんでした。[4] 毛が生え始めるまさにそのつぼみの中で、毛を作るための信号がオフになっているのです。
研究者らが現代のネクタリン品種の主な祖先や南イタリアの古い在来品種まで調べたところ、すべてが同じ挿入を持っていました。彼らは、ネクタリンのつるつるした皮はたった1回の突然変異の出来事にさかのぼると結論づけました。[4] ただし、まれな例外もあります。2025年、台湾の研究者らが295系統のモモを調べたところ、294系統がこの遺伝子型と産毛の有無のパターンに一致しました。一方、モモから生じた「Maravilha Nectarine Mutant」という1系統は、遺伝子配列に異常がないにもかかわらず毛がなく、PpMYB25の転写産物がまったく検出されませんでした。[8] 配列が壊れているかスイッチがオフになっているかの違いはあっても、産毛の有無はこの遺伝子が働いているかどうかにかかっているのです。
英語の「nectarine」という言葉が初めて文献に登場したのは1611年ですが、ネクタリンはおそらくそれよりずっと前から、モモの原産地である中央アジアや東アジアで栽培されていたと考えられています。[3] 2013年時点で、ネクタリンはイタリアのモモ生産量の30パーセント、アメリカでは20パーセントを占めていました。[4]
産毛とアレルギー:皮に多く含まれるタンパク質
モモを食べたり触ったりすると、口の中がかゆくなったり喉がイガイガしたりする人がいます。主な原因物質の1つは、約9キロダルトンの非特異的脂質輸送タンパク質(nsLTP)であるPru p 3です。スペインで行われた前向き研究では、モモアレルギー患者302人のうち83.4パーセントがPru p 3に感作されていました。[9]
このタンパク質は果肉よりも皮に多く含まれています。黄色いモモと赤いモモを調べた研究では、果皮の抽出物には果肉の抽出物の約7倍もの脂質輸送タンパク質が含まれていました。[10] 産毛にも同様に豊富に含まれています。イタリアの研究者らは、モモの産毛の抽出物にこのタンパク質が多量に含まれており、患者の血清が果皮よりも産毛に強く反応することを報告しました。また、販売前のブラッシングや洗浄で産毛がどれだけ落ちるかの違いが、北欧よりも地中海沿岸諸国でこのアレルギーが多く見られる理由の1つになっているのではないかという仮説も提唱しています。[11] さらに、熟したモモのトライコームの内部でもPru p 3が観察されています。[6] 熱や消化酵素に強い構造をしているため、加熱調理をしても簡単には失われません。[9]
それでも、モモの産毛が人を困らせるためにあると言うのは本末転倒です。この毛は果実の水分と表面を守るための構造であり、皮や産毛にアレルゲンとなるタンパク質が多く含まれていることとは別の話です。モモアレルギーがある場合は、皮をむいたり洗ったりすれば安全だと決めつけず、アレルギー専門医に相談するほうがよいでしょう。
モモの産毛は、果物売り場で生まれるわけではありません。葉より先に開く5枚の花びらを持つ花の真ん中、開花のおよそ1か月前のつぼみの中にある子房からすでに始まっているのです。その毛を作る信号はPpeMYB25というたった1つの遺伝子から発せられており、その遺伝子に動く遺伝子が入り込んだ木には、つるつるしたネクタリンが実ります。花と果実、見た目と遺伝子が一本の線でつながっていることは、近づいて見るほど神の創造がいかに精妙に織り上げられているかを物語っています。
参考文献
- Encyclopaedia Britannica: Peach — 中国原産、樹高、葉の腺体、花弁、がく片、3輪のおしべと花托筒、核果。
- Flora of China: Amygdalus persica — 葉より先に開く花、直径2〜3.5 cm、20〜30本のおしべ、毛の生えた子房、中国北部原産。属の解説:子房内に2個の胚珠。
- Wikipedia: Peach — 学名の由来、栽培化と跨湖橋遺跡、自家結実性と約5%の他家受粉、ネクタリンの歴史(1611年、1906年、1917年)。
- Vendramin et al. (2014): A Unique Mutation in a MYB Gene Cosegregates with the Nectarine Phenotype in Peach. PLoS ONE — 開花4週間前の子房の毛、PpeMYB25の発現時期、G遺伝子座1.1 cM(635 kb)、エクソン3へのTy1-copiaの挿入と112アミノ酸での短縮、単一の変異起源、生産シェア。
- Fernández et al. (2011): New Insights into the Properties of Pubescent Surfaces: Peach Fruit as a Model. Plant Physiology — トライコーム(毛状突起)の組成、毛やワックスを除去した後の乾燥の早まり、毛の層とクチクラの性質の違い。
- Fu et al. (2025): The role, regulation and application of plant fruit trichomes. Molecular Horticulture — モモのトライコームの構造と機能、収穫直後のブラッシング、トライコームにおけるPru p 3の存在部位。
- Shen et al. (2023): Effect of peach trichome removal on post-harvest brown rot and on the fruit surface microbiome. International Journal of Food Microbiology — トライコーム除去後の灰星病の減少と果実表面のマイクロバイオームの変化。
- Huang et al. (2025): Transcriptomic analysis of peaches and nectarines reveals alternative mechanism for trichome formation. BMC Plant Biology — 295系統のスクリーニングとMaravilha Nectarine Mutantの例外。
- Thermo Fisher Allergen Encyclopedia: Pru p 3 (f420) — 9 kDaのnsLTP、スペインの患者302名中83.4%での感作、熱および消化酵素に対する耐性。
- Carnés et al. (2002): Pru p 3 (LTP) content in peach extracts. Allergy — 果皮には果肉の約7倍のLTPが含まれる。
- Asero et al. (2006): Peach fuzz contains large amounts of lipid transfer protein. European Annals of Allergy and Clinical Immunology — 産毛抽出物中のLTPと出荷前の取り扱いに関する仮説。